金黄色葡萄球菌严重危害人类健康,仅在美国每年就造成近 2500 万例感染,同时它也是全球致死率最高的细菌性病原体。金黄色葡萄球菌在生命早期即可定植于皮肤和鼻咽部,约 70% 新生儿鼻腔可检出该菌。一旦条件适宜,金黄色葡萄球菌几乎可以侵染人体所有微生境,引发多种疾病:从常见的浅表皮肤及软组织感染,到肺炎、心内膜炎、败血症等侵袭性重症感染。此外,金黄色葡萄球菌复发性感染是一大临床难题,超过 20% 感染者会反复发病。不同个体对复发性或侵袭性感染易感性差异的分子基础,与外科手术、静脉留置装置以及吞噬细胞发育和功能异常相关。但金黄色葡萄球菌感染同样可发生于健康人群,部分患者会转为反复感染或进展为侵袭性疾病。研究观察到个体间免疫应答存在差异,这种差异可能使部分人群更易感金黄色葡萄球菌。人体持续暴露于细菌内毒素(脂多糖,LPS)、病原体等炎症刺激物,这类刺激可对宿主防御产生差异化重编程,这或许是患者对金黄色葡萄球菌易感性不同的原因。
机体针对金黄色葡萄球菌的有效免疫应答,依赖中性粒细胞、单核细胞(MONO)、巨噬细胞等固有免疫细胞协同作用。金黄色葡萄球菌侵入组织后,组织原位巨噬细胞与上皮细胞释放免疫调节因子,招募循环血细胞迁移至感染部位。中性粒细胞是首应答细胞,可在数小时内迁移至病灶并大量杀灭细菌。中性粒细胞通过多种机制清除胞外菌:向胞外基质释放毒性酶、活性氧(ROS)以及 DNA。若无法在合适的时空条件下清除这些破坏性分子,它们同样会损伤宿主自身组织。单核细胞也会被招募至感染部位,与原位巨噬细胞一同参与杀菌,同时负责清除受损细胞与释放到胞外的毒性物质,恢复组织稳态。巨噬细胞表达 Tyro3、Axl、Mer 等家族受体,可识别凋亡细胞表面的 “来吞噬" 配体,启动胞葬作用(efferocytosis)完成摄取。从胞外摄取毒性物质对于炎症消退至关重要,而巨噬细胞也有可能储存这些物质以备后续使用。近期研究显示,取自不同患者的原代固有免疫细胞对免疫刺激的应答各不相同。尽管遗传变异显著影响免疫应答,但微生物预暴露等非遗传因素同样会造成应答差异。低水平炎症介质的反复或持续刺激,无疑能够调控固有免疫细胞功能。但目前尚不明确:免疫刺激预暴露能否调控固有免疫细胞,进而抵御重症金黄色葡萄球菌感染。
肺部持续接触各类环境颗粒与微生物颗粒,这些物质可调控炎症应答。既往研究表明,预先接触 LPS、卡介苗(BCG)或其他微生物等免疫刺激物,能够诱导机体产生抵抗力,抵御后续细菌性肺部感染。预暴露带来的保护效应,与肺泡巨噬细胞(AM)、中性粒细胞的表型及功能重塑有关。例如,初次免疫刺激可改变肺泡巨噬细胞表面标志物表型,使其对后续刺激的炎症应答发生变化。与此同时,LPS 或卡介苗刺激可重塑中性粒细胞亚群,并上调其抗菌基因表达。另有研究证实,LPS 预处理小鼠的肺泡巨噬细胞可耐受后续免疫攻毒诱导的细胞死亡。上述结果提示:初次免疫刺激可诱导保护性适应,该过程依赖肺泡巨噬细胞与中性粒细胞之间的信号互作,从而更好地抵御病原体。但该适应性变化背后的机制尚不明确。
本研究构建耐甲氧西林金黄色葡萄球菌(MRSA)肺炎体内模型,探究反复暴露于免疫刺激物或病原体所诱导的保护性适应机制。我们发现,低剂量 LPS、Pam3CSK4、聚肌胞苷酸(Poly:IC)或非致死剂量 MRSA 预处理,可保护小鼠免于后续致死剂量 MRSA 感染。免疫刺激预暴露能够促进肺泡巨噬细胞摄取中性粒细胞释放的抗菌物质,杀灭 MRSA 并抑制过度炎症状态。综上,本研究解析了一种尚未见报道的巨噬细胞宿主防御体内机制:肺泡巨噬细胞获取中性粒细胞释放的效应物质,以此促进 MRSA 清除与炎症消退。

人类持续接触各类炎症刺激物,既包括来自外界环境的外源刺激,也包括反复感染过程中产生的内源刺激。但既往的刺激暴露如何塑造机体针对后续感染的炎症应答,目前尚不明确。本研究发现,经口咽途径给予非致死剂量脂多糖(LPS)、Pam3CSK4、聚肌胞苷酸(Poly:IC)或耐甲氧西林金黄色葡萄球菌(MRSA)预处理的小鼠,在遭遇后续致死剂量 MRSA 攻毒时存活率更高。与未处理对照组小鼠相比,该预暴露处理能够提升 MRSA 清除效率,并促进炎症快速消退。这种增强的保护效应与肺泡巨噬细胞(AM)自我更新水平升高相关,证据是可观察到源自原位肺泡巨噬细胞的双核增殖细胞。重要的是,肺泡巨噬细胞被重编程,能够从胞外基质摄取中性粒细胞抗菌酶,杀灭 MRSA、避免组织损伤,并快速恢复肺部稳态。具体而言,肺泡巨噬细胞上调一系列特异性基因,包括 MerTK 和 Bcl‑xL,通过增强胞葬作用,介导针对 MRSA 的保护性免疫适应。综上,本研究数据表明:经免疫刺激预暴露后形成的保护性固有免疫适应中,自我更新的肺泡巨噬细胞、以及通过胞葬作用高效摄取中性粒细胞来源酶分子,是两个关键环节。
训练免疫这一概念近年被提出,指细胞在反复接触免疫刺激、回到非活化状态后获得的固有免疫适应性改变。但目前尚未证实,细胞是否必须回归静息状态才能形成训练免疫相关适应性改变。细胞恢复静息状态,是区分初次炎症信号与二次训练型固有免疫应答的分界点。此外,活化与静息状态之间的差异,主要体现在选择性炎症基因的表达上。在本模型体系中,我们观察到初次炎症反应必须消退,才能诱导产生针对 MRSA 的保护效应。若 LPS 刺激后 24 小时初始炎症仍维持高位,小鼠无法获得针对 MRSA 的保护;而 LPS 刺激至少 3 天之后,即便仍存在残余炎症,小鼠也可获得保护。这种保护效应在 LPS 处理后至少持续 3 天、并可维持数周,该时间规律也与近期其他研究报道一致。据此我们推测,训练免疫在免疫刺激暴露早期即启动,但机体需要一段炎症消退期,才能区分初次免疫应答与训练后免疫应答。
炎症刺激暴露可诱导肺泡巨噬细胞发生扩增与表型改变。本研究基于 CD11c 与 CD170 双阳性细胞计数对肺泡巨噬细胞进行定量,结果显示,与未处理小鼠相比,LPS 暴露小鼠肺泡巨噬细胞绝对数量上升。既往研究也报道过类似现象:小鼠接受 LPS 刺激后肺泡巨噬细胞数量先下降,第 6 天出现反弹。另有近期研究提出,肺泡巨噬细胞面对免疫刺激时主要发生表型可塑性变化,而非细胞数量扩增。该研究发现,LPS 刺激 14 天后,小鼠肺内的肺泡巨噬细胞根据表面标志物可分为 4 个亚群:原始高 Siglec F 肺泡巨噬细胞(CD170⁺、CD11b⁻、MHC II⁻)、原始低 Siglec F 肺泡巨噬细胞(CD170 低表达、CD11b⁻、MHC II⁻)、原始低 Siglec F、MHC II 阳性肺泡巨噬细胞(CD170 低表达、CD11b⁻、MHC II⁺),以及一类全新的低 Siglec F、高 CD11b 肺泡巨噬细胞亚群(CD170⁺、CD11b⁺、MHC II⁻)。与我们的数据不同,该研究显示 LPS 刺激 14 天时,原始肺泡巨噬细胞的绝对数量和刺激前无差异;训练后的巨噬细胞未掺入 5‑溴‑2′‑脱氧尿苷(BrdU),进一步佐证不存在巨噬细胞扩增。尽管我们在训练后的肺泡巨噬细胞中未检测到 Ki‑67 增殖标志物(数据未展示),但 Ki‑67 阴性并不代表细胞没有发生分裂。另外,细胞完成分裂后 BrdU 染色信号也会消失。因此需要开展精细的时间梯度 BrdU 示踪实验,才能确认 BrdU 阴性是细胞未发生分裂导致。本研究直接在肺组织中观察到双核肺泡巨噬细胞,提示这些细胞正在进行分裂。当然,现有数据并不能排除这些细胞同时存在表型可塑性。因此我们提出,在免疫刺激作用下,肺泡巨噬细胞会发生增殖、获得抗损伤能力并产生表型可塑性,以此抵御呼吸道病原体。
中性粒细胞是免疫刺激暴露诱导保护性免疫适应的关键组分;但如果中性粒细胞的应答得不到有效调控,其活化效应就是一把两面针。通常,中性粒细胞过度活化会引发严重的组织损伤,造成不良结局。在肺这类重要脏器中,中性粒细胞过度活化往往会诱发器官衰竭甚至死亡。但本研究提示,若伴随毒性物质清除能力同步提升,中性粒细胞活性增强可以带来强效保护。与此相符,多项研究证实,免疫刺激预暴露可提升中性粒细胞在后续攻毒时的募集能力与功能,介导具有保护作用的训练免疫应答。LPS 或卡介苗刺激能够诱导中性粒细胞特异性表达部分基因,可能参与中性粒细胞介导的杀菌过程。不过,免疫刺激究竟是直接重编程中性粒细胞使其产生独特应答,还是通过改变器官局部微环境进而调控中性粒细胞功能,目前仍存在争议。中性粒细胞寿命很短,不太可能被重编程而形成免疫记忆。相反,多项研究提示,中性粒细胞获得免疫记忆的能力依赖造血祖细胞:初次免疫刺激促使造血祖细胞发生代谢与表观遗传重塑,分化产生抗菌功能更强的中性粒细胞。和既往研究结论一致,我们发现 LPS 暴露可促进中性粒细胞胞外诱捕网(NET)释放至支气管肺泡灌洗液(BALF)中,捕获并杀灭 MRSA。重要的是,清除中性粒细胞后,LPS 预处理小鼠的保护效应消失,说明中性粒细胞的效应功能需要。但将训练小鼠体内纯化的中性粒细胞过继转移至未处理小鼠,无法赋予受体小鼠保护能力。这说明,LPS 诱导的肺部微环境改变,是中性粒细胞发挥保护性效应功能的必要条件。因此,经过重编程的中性粒细胞或中性粒细胞祖细胞,无法依靠细胞自主方式单独提供保护。
预先接触免疫刺激,会赋予肺泡巨噬细胞一项能力:从胞外基质摄取中性粒细胞来源的抗菌酶,杀灭 MRSA 并防止组织损伤。之前的原代细胞培养研究已经证实,人巨噬细胞可以摄取中性粒细胞来源的抗菌分子,并在吞噬体中利用这些分子杀菌。但调控该过程的机制,以及该现象是否在体内发生,一直尚不明确。本研究离体显微分析得到一个意料之外的结果:LPS 暴露小鼠的肺泡巨噬细胞可检出中性粒细胞来源酶(髓过氧化物酶 MPO、弹性蛋白酶)。虽然我们发现单独抑制 MPO 不足以削弱 LPS 预处理小鼠的保护效应(数据未展示),但其他中性粒细胞防御素可能代偿 MPO 的功能。因此仍有待解答:肺泡巨噬细胞摄取胞外基质中的中性粒细胞分子,究竟是为了在吞噬体内杀灭 MRSA、预防组织损伤,还是同时实现两种作用。但阻断肺泡巨噬细胞摄取 MPO 后,LPS 预处理小鼠对后续 MRSA 攻毒高度易感。这说明,肺泡巨噬细胞获取中性粒细胞来源抗菌分子,是初次免疫刺激诱导固有免疫适应的核心组成部分。进一步分析显示,LPS 暴露小鼠特异性上调多种胞葬调控分子(MerTK、Marco、CD68、Itgb2)以及抗凋亡分子(Bcl‑xL、Mcl‑1)。抑制胞葬受体 MerTK 或者抗凋亡蛋白 Bcl‑xL,都会阻断肺泡巨噬细胞摄取中性粒细胞来源 MPO,使小鼠对 MRSA 易感。有意思的是,阻断 Bcl‑xL 并不会造成肺泡巨噬细胞死亡,提示该分子还可调控其他细胞功能。除抗凋亡之外,Bcl‑xL 还参与线粒体代谢调控,这可能是免疫刺激诱导固有免疫适应的途径。总而言之,肺泡巨噬细胞捕获中性粒细胞释放的抗菌酶以增强宿主防御,是固有免疫细胞之间协同防御的一种策略,也是免疫刺激诱导固有免疫适应的机制。
论文信息:
论文题目:Exposure to immune stimuli augments alveolar macrophages to acquire neutrophil antimicrobial molecules to prevent bacterial pneumonia
时间期卷:Volume 45, Issue 11, 118229
DOI: 10.1016/j.celrep.2026.118229
产品信息:
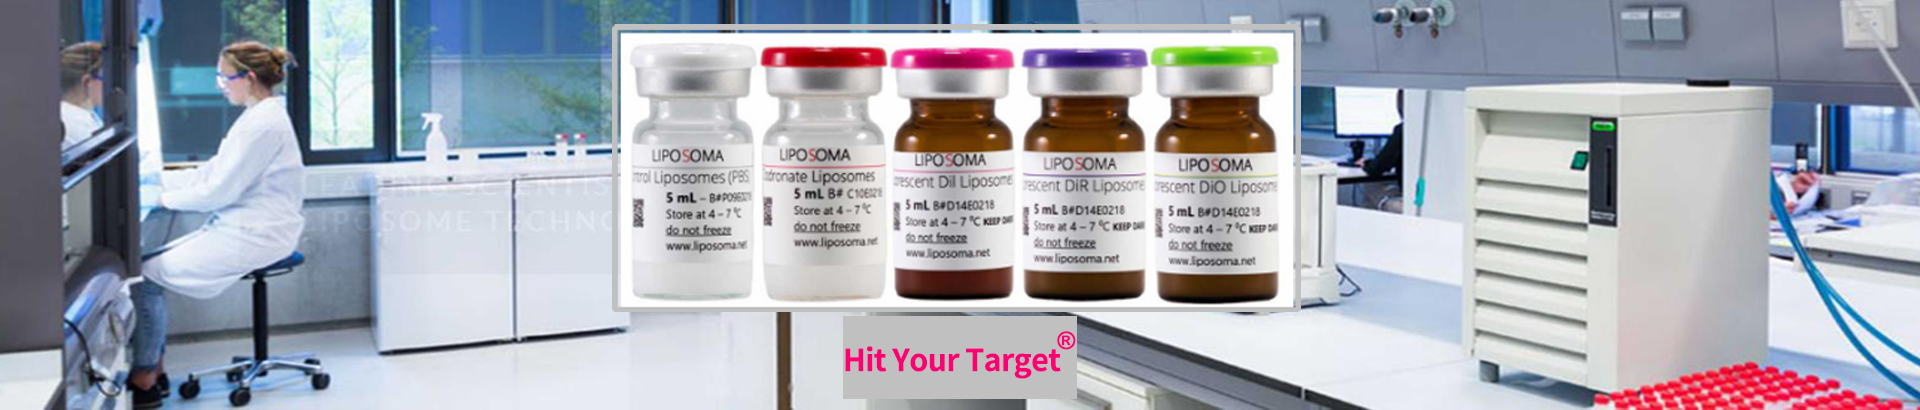
货号:CP-005-005
规格:5ml+5ml
品牌:Liposoma
产地:荷兰
名称:Clodronate Liposomes&Control Liposomes
现货:靶点科技
Clodronate Liposomes氯膦酸盐脂质体清除小鼠肺泡巨噬细胞(AM),研究发现:
•免疫刺激暴露可抵御后续致死性细菌性肺炎
•免疫刺激提升肺泡巨噬细胞(AM)的数量与功能
•该免疫适应促使肺泡巨噬细胞获取中性粒细胞来源的抗菌物质
•抑制 MerTK 或 Bcl‑xL 会阻碍肺泡巨噬细胞功能、削弱宿主防御